
Una flor no está hecha para nosotros. Es un anuncio dirigido a un insecto o a un pájaro, con un presupuesto ajustado y un objetivo comercial muy concreto: que el mensajero se lleve el polen y lo deje en el sitio correcto. Llevamos milenios interceptando correspondencia ajena y llamándola belleza. Preguntarse por qué nos parecen bonitas resulta bastante más revelador que enumerar cuáles lo son, entre otras cosas porque explica también los casos en que la belleza no es una señal, sino un accidente estructural o el resultado de siglos de selección humana.
Publicidad con presupuesto limitado
Producir una corola grande y coloreada cuesta carbono, nitrógeno y agua, y no aporta ni un gramo de fotosíntesis. Una planta solo mantiene esa inversión si le devuelve descendencia. El corolario es que cada rasgo llamativo de una flor cumple una función de comunicación: atraer a distancia, identificarse frente a otras especies, indicar dónde está el néctar y en qué postura hay que entrar, y a veces señalar si la flor sigue teniendo recompensa o ya ha sido visitada.
Eso último ocurre con más frecuencia de la que parece. Muchas flores cambian de color después de ser polinizadas —el lantana pasa de amarillo a naranja y rojo, la pulmonaria de rosa a azul— sin dejar caer los pétalos: mantienen el conjunto vistoso para seguir atrayendo desde lejos, pero avisan de cerca al visitante de que no pierda el tiempo. Es gestión de inventario.
El espectro que no vemos
El ojo humano es tricromático con sensibilidades máximas en torno a 420, 530 y 560 nanómetros: azul, verde y rojo. El de una abeja también es tricromático, pero desplazado: sus tres receptores responden aproximadamente a 344, 436 y 544 nm, es decir, ultravioleta, azul y verde. La ventana está corrida, y las consecuencias son enormes.
La primera es que una abeja no percibe el rojo puro: para ella es oscuro, prácticamente negro. Por eso las flores de rojo intenso y tubo largo suelen estar dirigidas a aves —colibríes en América, nectarínidas en África y Asia—, que sí ven bien esa franja y además carecen de sentido del olfato desarrollado, lo que explica que esas flores casi nunca huelan. Cuando una flor europea de aspecto rojo recibe abejas, como la amapola, es porque además refleja ultravioleta, y lo que la abeja ve no es lo que vemos nosotros.
La segunda es que buena parte del diseño floral está pintado en un canal invisible para nosotros. Fotografiada con filtro ultravioleta, una Potentilla o un Helianthemum amarillo uniforme muestra una diana oscura concentrada en la base de los pétalos, señalando el centro con la misma lógica que las luces de una pista de aterrizaje. Estas guías de néctar reducen el tiempo de manipulación del insecto y aumentan la probabilidad de que el polen se deposite donde debe.
Cuando el color no es pigmento
No todo el color floral procede de antocianinas, carotenoides o betalaínas. Algunas especies producen color estructural: nanoestrías regulares en la cutícula del pétalo que difractan la luz y generan un halo azulado iridiscente. Se ha descrito en Hibiscus trionum, en tulipanes y en varias más, y los experimentos con abejorros indican que ese halo les resulta detectable y facilita el reconocimiento. Un color sin pigmento, hecho solo de geometría.
Los pétalos guardan más recursos de ese tipo. Muchas flores tienen las células de la epidermis en forma de cono, lo que aumenta la absorción de luz —el color se ve más saturado— y proporciona al mismo tiempo un agarre antideslizante para las patas del visitante. El terciopelo de un pensamiento y la profundidad del púrpura son la misma cosa.
Olor, calor y engaño
El canal olfativo funciona en paralelo y suele estar sincronizado con el horario del destinatario. Las flores de polillas nocturnas tienden a ser blancas o muy pálidas, porque el blanco es lo más visible con poca luz, tubulares, y sueltan su perfume al anochecer: Cestrum nocturnum, Brugmansia, las madreselvas, el jazmín. Las de escarabajos, en cambio, son abiertas, robustas y con olor fuerte y frutal o fermentado.
Hay estrategias más ingeniosas. Varias aráceas practican termogénesis: la inflorescencia quema reservas y eleva su temperatura entre diez y veinte grados sobre la del aire, lo que volatiliza los compuestos aromáticos y los difunde a distancia, además de ofrecer un refugio cálido al insecto. Y luego está el engaño puro, flores que prometen y no dan: las estapelias y la Rafflesia imitan carne en descomposición —color pardo rojizo, textura pilosa, olor a putrefacción— para atraer moscas que buscan un lugar donde poner huevos, y las orquídeas del género Ophrys imitan la forma, la pilosidad y las feromonas de una hembra de abeja para que el macho intente aparearse con la flor.
Por qué nos afecta a nosotros
Interceptamos esas señales con un aparato perceptivo distinto, así que la pregunta de fondo es por qué nos gustan si no van dirigidas a nuestra especie. Hay respuestas razonables, y conviene presentarlas como lo que son: hipótesis con apoyo desigual, no hechos cerrados.
El contraste con el fondo funciona igual para un ojo humano que para uno compuesto: un objeto saturado sobre un fondo verde llama la atención de cualquier sistema visual. La simetría es un patrón que nuestro cerebro procesa con enorme facilidad y que asociamos a salud y a orden. Los patrones fractales de complejidad intermedia, como los de una fronde de helecho o la ramificación de un árbol, aparecen de forma recurrente en los estudios de preferencia estética. Y la hipótesis de la biofilia propone que la vegetación exuberante y florida señalaba históricamente agua, alimento y estación favorable, de modo que responder positivamente a ella tuvo valor adaptativo. Ninguna de estas explicaciones excluye a las demás.
Cuatro tipos de belleza distintos
Repasando lo que suele encabezar cualquier recopilación, aparecen categorías que no tienen nada que ver entre sí.
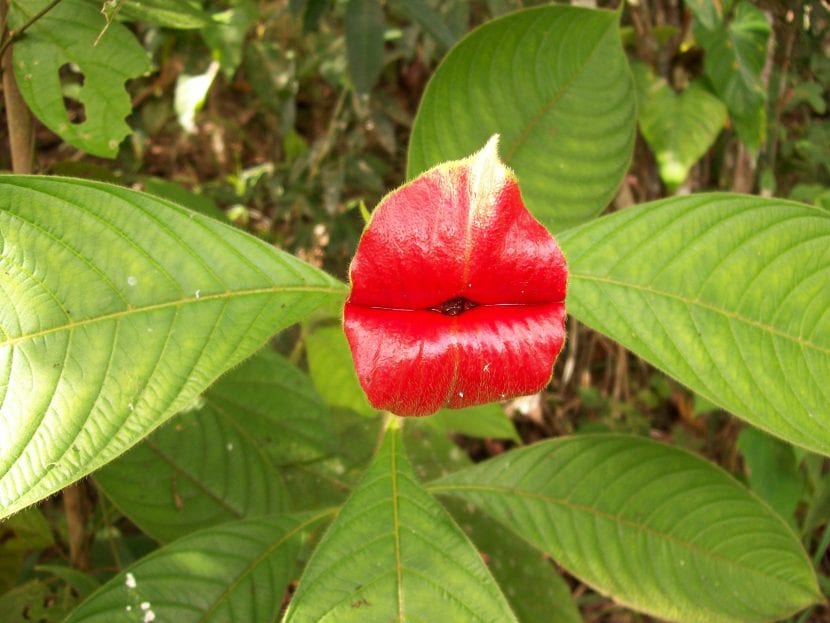
Belleza que es señal. La Psychotria elata centroamericana debe su fama a unas brácteas rojas carnosas que recuerdan unos labios pintados; la flor auténtica es pequeña, blanca y asoma después. Esas brácteas son el reclamo visual para colibríes y mariposas. Peristeria elata, la orquídea del Espíritu Santo y flor nacional de Panamá, esconde en su interior una estructura que evoca una paloma con las alas abiertas y que en realidad es la columna y el labelo, la maquinaria que coloca los polinios sobre la abeja. Bombax y Ceiba florecen con el árbol desnudo, sin una sola hoja que compita por la atención.
Belleza que es trampa. Drosera regia parece cubierta de rocío al amanecer; ese brillo lo producen glándulas pedunculadas que segregan un mucílago pegajoso y digestivo, y el destello es precisamente el reclamo. Darlingtonia californica, el lirio cobra, remata su hoja tubular en una cúpula con ventanas translúcidas: el insecto que entra intenta escapar hacia la luz, choca una y otra vez con esas falsas salidas y termina cayendo. La belleza, aquí, es un dispositivo de captura.
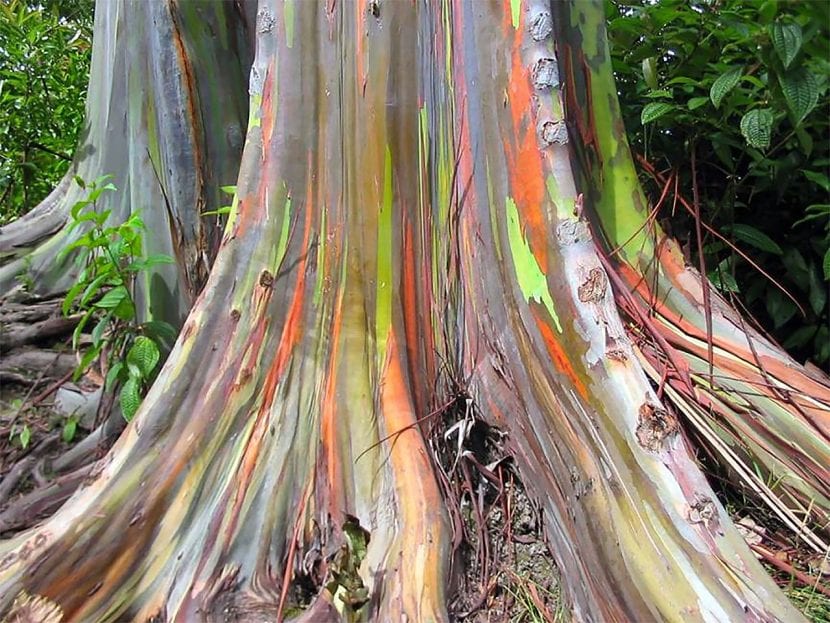
Belleza que es arquitectura, sin destinatario. El rojo otoñal de Acer palmatum lo producen antocianinas sintetizadas mientras la hoja se vacía, y no van dirigidas a nadie. La corteza de Eucalyptus deglupta, el eucalipto arcoíris, se desprende en tiras a lo largo del año dejando al aire capas de floema joven de color verde brillante que van oxidándose a azul, morado, naranja y marrón: un mosaico cromático que es puro subproducto del ritmo de desprendimiento. Las hojas plateadas en abanico de Bismarckia nobilis deben su tono a una cubierta cerosa que refleja la radiación de Madagascar.
Belleza que es tiempo. Pinus longaeva, el pino longevo de las Montañas Blancas de California, alcanza los cuatro mil quinientos años y su atractivo consiste en madera pulida por el viento, troncos retorcidos y una franja delgada de corteza viva que mantiene un puñado de ramas. Ahí lo que emociona no es ninguna señal biológica, sino la escala temporal. Y en el extremo del movimiento está Mimosa pudica, cuyos foliolos se pliegan al tacto en un segundo porque unas células motoras del pulvínulo pierden potasio y con él el agua, colapsando la presión de turgencia; un mecanismo defensivo contra herbívoros que a nosotros nos resulta simplemente encantador.
La belleza que hemos fabricado
La otra mitad de la historia es nuestra. Siglos de selección han producido flores que a ningún polinizador le sirven de nada.
El caso central es la flor doble. Rosas, camelias, peonías, claveles y dalias de muchos pétalos son el resultado de mutaciones en genes homeóticos de identidad de órgano floral —la familia de AGAMOUS— que hacen que los estambres se desarrollen como pétalos. El resultado es una flor con mucho más volumen, casi siempre estéril o de fertilidad muy reducida, sin polen accesible y con el néctar sepultado bajo capas de tejido. Preciosa para nosotros e inútil para una abeja, que la sobrevuela sin detenerse.
Otro precio conocido es el aroma. En la rosa de corte, la selección se dirigió durante décadas a la forma del capullo, al color, a la longitud del tallo y a la duración en jarrón; los genes implicados en la síntesis de compuestos volátiles quedaron fuera del criterio y se fueron perdiendo en el camino. De ahí que una rosa de floristería impecable con frecuencia no huela, mientras que una rosa antigua de jardín perfuma un patio entero.
Y están los colores imposibles. Las rosas carecen de la vía metabólica que produce delfinidina, el pigmento responsable del azul, así que ninguna selección clásica podía obtener una rosa azul: las llamadas azules son lavandas o rosas blancas teñidas. Las versiones transgénicas de rosa y clavel, obtenidas insertando genes de petunia y de pensamiento, consiguen un malva grisáceo y poco más, porque el color final depende también del pH de la vacuola y de los cofactores metálicos. En el siglo XVII, los tulipanes jaspeados que dispararon la tulipomanía holandesa y llegaron a cotizarse como una casa debían sus llamas de color a una infección por virus que además debilitaba al bulbo: se pagaban fortunas por una enfermedad.
De todo esto sale una recomendación práctica para un jardín. Si además de mirar flores se quiere ver actividad en ellas, conviene reservar sitio a las formas simples: rosales de cinco pétalos, cosmos, salvias, lavandas, borrajas, un solo Echium. Son las que siguen teniendo el anuncio operativo.
En resumen
El color, el olor y la forma de una flor son un mensaje para su polinizador, con la información codificada en parte en el ultravioleta que nosotros no vemos y en un espectro donde el rojo puro es oscuro para una abeja y brillante para un colibrí. A eso se suman guías de néctar, colores estructurales sin pigmento, termogénesis y engaños sexuales o de carroña. Lo que nos parece hermoso mezcla esa señalización con belleza sin destinatario —cortezas, hojas otoñales, siluetas milenarias— y con lo que hemos construido por selección: flores dobles procedentes de estambres transformados, estériles y sin recompensa, rosas de corte sin aroma y azules que solo existen manipulando la ruta de la delfinidina. Saberlo no quita mérito a ninguna flor; explica de qué está hecha.

