
Un herbívoro que se acerca a una planta se enfrenta a un organismo que no puede huir, no puede esconderse y no tiene sistema inmunitario circulante ni células defensivas móviles. A cambio, ha desarrollado durante cuatrocientos millones de años un arsenal químico y estructural de una sofisticación que la biología animal rara vez iguala. Las plantas no son presas pasivas: son fábricas de armas que perciben el ataque, lo identifican y responden a él de forma dirigida.
Dos grandes categorías
Toda la defensa vegetal se ordena en dos bloques según cuándo se paga su coste.
Las defensas constitutivas están presentes siempre, ataque o no ataque. Son la barrera permanente, el equivalente a un muro. Cuestan energía de manera continua pero actúan desde el primer instante.
Las defensas inducidas se fabrican cuando el ataque ya ha empezado. Ahorran recursos mientras no hacen falta, pero tardan en llegar: horas o días. Son la respuesta condicional, y su existencia implica que la planta dispone de un sistema de percepción capaz de distinguir un daño de otro.
La proporción entre unas y otras varía según la ecología de cada especie. Las plantas de vida larga y crecimiento lento, en ambientes pobres, tienden a invertir en defensas constitutivas caras y duraderas. Las de crecimiento rápido en ambientes ricos apuestan por la inducción, porque pueden permitirse reponer tejido perdido.
Las defensas constitutivas: la armadura
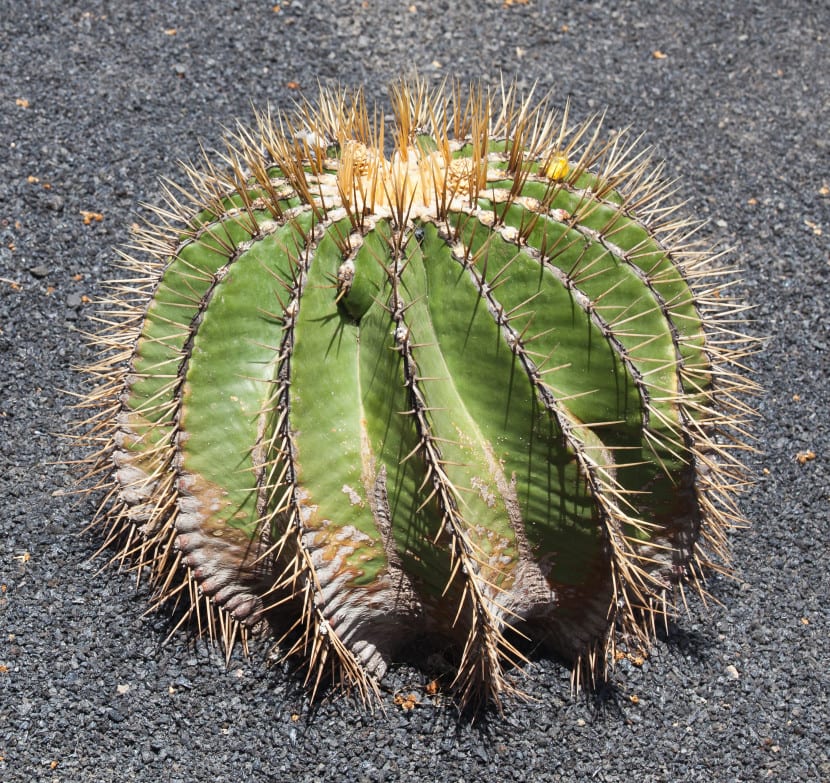
Espinas, aguijones y acúleos. No son todos lo mismo, y la distinción tiene sentido funcional. Las espinas verdaderas son hojas u órganos foliares transformados, como en los cactus, donde toda la lámina se ha reducido a una púa lignificada; las del cactus cumplen además funciones de sombreado y de condensación de rocío. Los aguijones de la rosa o de la zarza son emergencias de la epidermis y se desprenden con facilidad, precisamente porque no llevan haces vasculares. Unas y otras funcionan contra vertebrados grandes, no contra insectos.
Tricomas. Los pelos epidérmicos son una defensa mucho más eficaz de lo que aparentan a escala de insecto. Los tricomas simples estorban físicamente el desplazamiento de larvas pequeñas y les impiden alcanzar la epidermis para morder. Los tricomas glandulares van más lejos: contienen sustancias pegajosas o tóxicas que se liberan al romperse. Los del tomate atrapan pulgones y moscas blancas, que quedan inmovilizados y mueren.
Sílice. Las gramíneas acumulan sílice amorfo en células especializadas, los fitolitos, hasta constituir varios puntos porcentuales del peso seco de la hoja. El efecto es doble: desgasta abrasivamente la dentadura del herbívoro y reduce la digestibilidad del forraje. La coevolución entre gramíneas silicificadas y grandes herbívoros de diente hipsodonto —con corona alta, para durar más— es uno de los ejemplos clásicos de carrera armamentística en el registro fósil.
Ceras y cutícula. La capa cerosa que recubre las hojas cumple sobre todo función hídrica, pero también dificulta la adherencia de esporas fúngicas y de las patas de los insectos. En algunas especies las ceras epicuticulares son tan resbaladizas que forman trampas: las paredes internas del jarro de Nepenthes funcionan exactamente así.
Lignificación y esclerénquima. Engrosar y lignificar las paredes celulares convierte el tejido en material duro y poco digerible. Es la razón por la que una hoja vieja de laurel resulta despreciable para un herbívoro y una hoja tierna de la misma planta no.
Látex y resinas. Muchas especies almacenan a presión un fluido que brota al primer corte. El látex de las euforbiáceas y de las apocináceas coagula sobre las piezas bucales del insecto y las inutiliza, además de transportar compuestos tóxicos. Las resinas de las coníferas hacen lo mismo con los escarabajos perforadores y sellan la herida frente a hongos.
Percibir el ataque
Antes de responder hay que enterarse. Las plantas detectan el daño por dos vías simultáneas. Reconocen moléculas propias liberadas por la rotura celular —fragmentos de pared, ATP extracelular, péptidos como las sisteminas— que funcionan como señales de alarma internas. Y reconocen moléculas ajenas presentes en la saliva o en las secreciones del atacante: conjugados de ácidos grasos y aminoácidos en la saliva de las orugas, glucosa oxidasa, compuestos del fluido de puesta de huevos.
Esa doble lectura permite algo notable: distinguir un corte mecánico de una mordedura, y una mordedura de oruga de una picadura de pulgón. La respuesta que se despliega no es la misma en cada caso, porque el enemigo tampoco lo es.
La señal viaja después por la planta mediante ondas de calcio, ondas eléctricas comparables a potenciales de acción y especies reactivas de oxígeno, a velocidades de milímetros o centímetros por segundo. Una hoja atacada en la base puede tener alertadas a las hojas superiores en cuestión de minutos.
Las dos rutas hormonales y su antagonismo
Aquí está el núcleo conceptual de la defensa vegetal moderna.
La ruta del ácido jasmónico se activa frente a insectos masticadores y frente a hongos necrótrofos, los que matan el tejido y se alimentan de él. Su activación dispara la producción de inhibidores de proteasas —que impiden al insecto digerir las proteínas que come—, de polifenol oxidasas y de metabolitos secundarios defensivos.
La ruta del ácido salicílico se activa frente a patógenos biótrofos, los que necesitan tejido vivo para alimentarse, y frente a muchos insectos picadores-chupadores como pulgones. Conduce a la respuesta hipersensible —muerte celular programada alrededor del punto de infección, que aísla al invasor— y a la resistencia sistémica adquirida, un estado de alerta que protege al resto de la planta durante semanas.
Y ambas rutas se inhiben mutuamente. Activar la vía del salicílico reprime la del jasmónico y viceversa. Esto, que parece un fallo de diseño, es en realidad una asignación de recursos: dado que las contramedidas útiles contra un biótrofo son inútiles o contraproducentes contra un necrótrofo, la planta se compromete con una estrategia en lugar de repartir el gasto en las dos.
El antagonismo tiene consecuencias que se ven en campo. Ciertos patógenos y ciertos insectos manipulan la ruta equivocada a propósito para desactivar la que de verdad les afectaría: pulgones que inducen salicílico para apagar la respuesta jasmónica, bacterias que producen coronatina, un imitador del jasmonato, con el mismo fin. La planta puede ser engañada.
Junto a estas dos actúa el etileno, que modula ambas rutas y coordina la senescencia, el cierre de heridas y la caída de órganos dañados, y el ácido abscísico, que enlaza la defensa con la respuesta al estrés hídrico.
Volátiles: avisos y llamadas de auxilio
Lo más elegante del repertorio son los compuestos orgánicos volátiles inducidos por herbivoría. Una hoja mordida emite una mezcla característica de terpenos, derivados de ácidos grasos —los llamados volátiles de hoja verde, responsables del olor a césped recién cortado— y compuestos aromáticos. Esa mezcla cumple dos funciones distintas.
Comunicación interna. Los volátiles emitidos por una hoja alcanzan otras hojas de la misma planta y las preparan para el ataque. Como el aire es más rápido que el floema para llegar a puntos distantes, funciona como un atajo de señalización. Las hojas que han recibido el aviso no fabrican defensas de inmediato, pero quedan en estado de priming: sensibilizadas para responder antes y más fuerte si el ataque llega. El priming es barato, porque no implica producir nada hasta que hace falta.
Llamada a los enemigos del herbívoro. Los mismos volátiles atraen a parasitoides y depredadores. Las avispas del género Cotesia localizan orugas de Spodoptera guiándose por el perfil de volátiles que emite el maíz atacado, y depositan sus huevos en ellas. Los ácaros depredadores Phytoseiulus persimilis acuden al olor de la judía atacada por araña roja. La planta no puede matar al herbívoro, pero sí puede contratar a alguien que lo haga, y lo hace con especificidad química: el ramillete de volátiles varía según la especie que muerde, de modo que el parasitoide obtiene información sobre si su presa concreta está presente.
Este mecanismo tiene aplicación agronómica directa. Buena parte del control biológico por conservación consiste en mantener en la parcela vegetación que emita esas señales y aloje a los auxiliares que responden a ellas.
Metabolitos secundarios: el aroma es un arma
Las plantas producen decenas de miles de compuestos que no intervienen en el crecimiento ni en la reproducción. Se llaman metabolitos secundarios por eso, aunque el nombre resulta engañoso: no son subproductos, son inversión defensiva.
Alcaloides. Compuestos nitrogenados que actúan sobre el sistema nervioso de los animales. Nicotina, cafeína, morfina, estricnina, colchicina, atropina. La nicotina del tabaco silvestre se produce en la raíz y se transporta a la hoja, y su síntesis aumenta varias veces tras el ataque de una oruga.
Glucosinolatos. Característicos de las crucíferas —col, mostaza, rúcula, rábano—, son inocuos mientras están almacenados. Al romperse la célula entran en contacto con la enzima mirosinasa, guardada en compartimentos separados, y se hidrolizan en isotiocianatos punzantes y tóxicos. Es el sistema de la bomba de mostaza: dos componentes inertes por separado, activos al mezclarse. El picor del rábano y el olor de la col hervida son esa reacción funcionando.
Glucósidos cianogénicos. Mismo principio, distinto veneno: al romperse el tejido se libera cianuro de hidrógeno. Presentes en almendras amargas, huesos de melocotón, mandioca y hojas de laurel cerezo.
Taninos. Compuestos fenólicos que se unen a las proteínas y las precipitan, reduciendo la digestibilidad del alimento y la eficiencia del herbívoro. La astringencia de un caqui verde, de un vino tinto joven o de una bellota es esa propiedad en acción.
Terpenos. El grupo más numeroso. Aceites esenciales del romero, del tomillo, de la lavanda y del eucalipto; piretrinas del crisantemo, que son insecticidas de contacto; limonoides de los cítricos.
De aquí sale una idea que reordena la relación con el huerto y con la cocina: casi todo lo que apreciamos como aroma, sabor, picante, amargor o principio activo es, en origen, una molécula defensiva. El sabor de la mostaza, el picor de la guindilla, el amargo de la endibia, el aroma del orégano y la actividad farmacológica de la digital son variaciones del mismo hecho. La cocina y la farmacia humanas se han construido sobre el arsenal químico de plantas que intentaban no ser comidas, en dosis en las que ese arsenal resulta agradable o útil en lugar de letal. Que un compuesto tenga fama medicinal no lo hace inocuo: es exactamente su carácter de tóxico lo que le da actividad, y por eso las dosis, las interacciones y las contraindicaciones corresponden al médico y al farmacéutico, no al herbolario improvisado.
Defensas indirectas permanentes
Algunas plantas no se limitan a llamar a los auxiliares cuando hay problema: los tienen alojados. Las acacias africanas y las Vachellia centroamericanas ofrecen a hormigas del género Pseudomyrmex espinas huecas donde vivir y cuerpos nutritivos donde alimentarse, y a cambio las hormigas atacan a cualquier herbívoro que se pose y podan la vegetación competidora del entorno. Muchas otras especies, entre ellas cerezos, sauces y habas, disponen de nectarios extraflorales —glándulas de néctar fuera de la flor, en pecíolos o estípulas— cuya única función es mantener hormigas y avispas patrullando el follaje.
El coste: defenderse o crecer
Nada de esto es gratis. Sintetizar alcaloides consume nitrógeno que podría estar en proteínas fotosintéticas. Lignificar paredes cuesta carbono. Mantener tricomas glandulares gasta energía en cada hoja nueva. Y la maquinaria de señalización, cuando se activa, reprograma la expresión génica hacia la defensa y en contra del crecimiento.
El compromiso entre crecimiento y defensa está documentado con precisión: variedades de Arabidopsis con la ruta jasmónica activada de forma constitutiva crecen menos y producen menos semilla que las normales, incluso sin herbívoros presentes. En sentido inverso, una planta que percibe competencia por la luz —detectada como aumento de la proporción de rojo lejano en el espectro— reprime activamente sus defensas para dedicar todo a alargarse. Sabe que si pierde la carrera por la luz, no habrá nada que defender.
Ese compromiso explica varias cosas del cultivo. Explica por qué las variedades hortícolas seleccionadas durante siglos por rendimiento y por sabor suave son más vulnerables a plagas que sus parientes silvestres: al eliminar amargores hemos eliminado defensas. Explica por qué una planta sobreabonada de nitrógeno, empujada a crecer rápido, atrae pulgón. Y explica por qué un cierto grado de estrés controlado concentra aromáticas y aceites esenciales: la planta que lo pasa algo mal defiende más.
En resumen
La defensa vegetal se reparte entre lo permanente —espinas, tricomas, sílice, ceras, paredes lignificadas, látex— y lo inducido, que exige percibir el ataque, identificarlo y montar la respuesta. Esa respuesta se organiza en torno a dos rutas hormonales antagónicas, la del ácido jasmónico frente a masticadores y necrótrofos y la del ácido salicílico frente a biótrofos, y su exclusión mutua es una decisión de asignación de recursos que algunos atacantes aprenden a manipular. Los volátiles inducidos alertan a otras hojas y reclutan parasitoides, convirtiendo la química en comunicación. Los metabolitos secundarios —alcaloides, glucosinolatos, cianogénicos, taninos, terpenos— son el arsenal químico del que procede casi todo lo que llamamos aroma, sabor y principio activo. Y todo ello se paga en crecimiento no realizado, un equilibrio que la selección natural ajusta especie por especie y que la selección agronómica ha desplazado hacia el rendimiento, con la vulnerabilidad como factura.

