
Alrededor de la mitad de las calorías que consume nuestra especie procede directamente de tres plantas, y las tres pertenecen a la misma familia botánica: el arroz, el trigo y el maíz. Súmese la cebada, el sorgo, la avena, el centeno, los mijos y la caña de azúcar, y añádase el forraje con el que se alimenta el ganado del que sale la carne y la leche. Todo eso son Poaceae, las gramíneas.
Con unas 12.000 especies repartidas en unos 780 géneros, la familia no es la más numerosa del reino vegetal, pero sí la que ocupa más superficie: praderas, estepas, sabanas y pampas cubren entre la quinta parte y los dos quintos de la tierra emergida libre de hielo, y en todas ellas manda una gramínea. Y por si faltara amplitud, los bambúes también son gramíneas, hierbas de veinte metros con el mismo plan corporal que el césped.
Un tallo hueco y una hoja partida en dos
El plan anatómico de una gramínea es reconocible a simple vista y se repite desde el césped hasta la caña de azúcar.
El tallo se llama caña o culmo. Es cilíndrico, hueco entre nudos y macizo en cada nudo —con las excepciones del maíz, el sorgo y la caña de azúcar, macizos de arriba abajo—. Los nudos son abultamientos donde se insertan las hojas y donde se concentra el tejido capaz de crecer.
La hoja está dividida en dos piezas con funciones distintas. La vaina es la mitad inferior, que envuelve la caña como un tubo abierto por un lado y la refuerza mecánicamente; el limbo es la parte libre, alargada, de nerviación paralela. En el punto donde una pasa a la otra hay dos estructuras diminutas de enorme valor práctico: la lígula, una lengüeta membranosa o un fleco de pelos, y a veces las aurículas, dos apéndices que abrazan el tallo. Como las gramíneas pasan la mayor parte del año sin flor, la forma y el tamaño de la lígula son la clave principal para identificarlas en estado vegetativo, más fiable que el color o el porte. Cualquier guía de campo empieza por ahí.
Las hojas salen alternas y en dos filas opuestas, de modo que la planta vista desde arriba es plana. Y en la base, a ras de suelo o justo por debajo, está la corona: el conjunto de nudos apretados de donde salen las raíces adventicias y las yemas que producen los brotes laterales. Ese ahijamiento o macollamiento es lo que convierte una plántula en una mata y lo que permite que un césped forme manto en lugar de un puñado de tallos sueltos.
El meristemo intercalar: por qué se puede segar y pastar
Aquí está la particularidad que explica el papel de esta familia en la historia humana.
En la inmensa mayoría de las plantas, el tejido capaz de dividirse y producir células nuevas está en el ápice: en la yema terminal del brote y en el borde en formación de la hoja joven. Cortar la punta de un brote elimina ese tejido, y la planta tiene que rehacerlo a partir de una yema lateral.
Las gramíneas funcionan al revés. Conservan meristemos intercalares: zonas de tejido en división situadas en la base de cada entrenudo y, sobre todo, en la base del limbo de cada hoja, justo por encima de donde termina la vaina. La hoja no crece por la punta, crece empujada desde abajo, como sale una cinta de una máquina. Y ese punto de crecimiento está protegido, envuelto por las vainas de las hojas más viejas y situado a ras del suelo.
Las consecuencias son enormes:
Un herbívoro que arranca la parte alta de la hoja no se lleva ningún tejido generador. La hoja sigue alargándose desde su base como si nada. Un rebaño puede pastar un mismo prado semana tras semana durante siglos, y por eso las gramíneas y los grandes herbívoros llevan decenas de millones de años co-evolucionando: la hierba tolera el diente que aniquila a sus competidoras de hoja ancha y leñosas, y el pastoreo mantiene abierto el paisaje que la hierba necesita.
Un césped se puede segar cada semana. La misma razón. Ninguna otra familia soportaría ese trato.
Y hay un límite exacto: mientras el punto de crecimiento siga a ras de suelo, el corte es inocuo. Cuando la planta espiga, la caña se alarga y eleva la corona y los meristemos, y entonces un corte bajo sí los elimina. De ahí que la altura de siega tolerable dependa del estado de desarrollo de la planta y no de una cifra fija. Segar por debajo de la corona equivale a matarla, y ese es el motivo por el que en las praderas de siega se respetan alturas mínimas de corte, un asunto tratado en detalle en el artículo sobre el dáctilo.
El mismo mecanismo explica algo cotidiano en jardinería ornamental: cuando se recorta con tijera una mata de festuca o de Stipa, las puntas cortadas quedan pardas y no vuelven a crecer, porque la hoja seccionada ya no puede alargarse por encima del corte. Lo que hace la planta es sustituir la hoja entera desde la base.
La espiguilla y una flor sin pétalos
La unidad reproductiva de una gramínea no es la flor, es la espiguilla. Todo lo que parece una espiga, una panícula o un plumero está construido con espiguillas.
Cada espiguilla lleva en la base dos brácteas estériles, las glumas, y por encima uno o varios flósculos. Cada flósculo va envuelto por otras dos brácteas: la lema, que suele portar la arista —esa cerda larga y rígida del trigo o de la cebada—, y la pálea, más pequeña y membranosa.
Dentro está la flor propiamente dicha, reducida a lo esencial. No hay cáliz ni corola: ni sépalos, ni pétalos, ni néctar, ni color. Hay tres estambres de filamento largo y flexible con anteras versátiles, colgadas por el punto medio y capaces de bascular con la brisa; un ovario con dos estigmas plumosos, ramificados como diminutos plumeros; y dos escamitas casi microscópicas llamadas lodículas, que en el momento de la antesis se hinchan de agua y separan la lema de la pálea, abriendo la flor durante unas horas para que salgan las anteras.
El fruto es una cariópside: un fruto seco indehiscente en el que la pared del ovario está soldada a la cubierta de la semilla. Es decir, que un grano de trigo o de arroz no es botánicamente una semilla, es un fruto entero. Ese detalle, que parece una curiosidad de examen, es justamente lo que hace del grano de cereal un envase compacto, duradero y almacenable, y por tanto lo que permitió las primeras civilizaciones agrarias.
Viento en lugar de insectos
Todo lo anterior se entiende al saber que las gramíneas abandonaron la polinización por animales. Su polen viaja en el aire, y una flor anemófila no necesita ni pétalos ni perfume ni recompensa: necesita producir muchísimo polen, muy ligero, y ofrecer una superficie eficaz para atraparlo. De ahí los estambres colgantes y los estigmas plumosos.
El precio de esa estrategia lo paga la población alérgica. En España, las gramíneas comparten con el olivo el primer puesto entre las causas de polinosis primaveral, con un periodo que va de abril a junio y un máximo en mayo en el centro peninsular, antes en el litoral mediterráneo y más tarde en el norte y en la montaña. Como los alérgenos principales de las distintas especies de la familia son muy similares entre sí, quien reacciona a una reacciona a casi todas, y por eso se habla de alergia «a las gramíneas» en bloque y no a una especie concreta. El asunto, con el detalle de las proteínas implicadas y de sus consecuencias en jardinería, está desarrollado en el artículo dedicado a Dactylis glomerata.
Vale la pena retener solo la consecuencia práctica: una hierba que no espiga no poliniza. Mantener la siega durante la primavera es la medida más directa en un jardín de uso.
C3 y C4: dos motores para dos veranos
La familia contiene los dos grandes sistemas de fijación del carbono que existen en las plantas, y esa división explica por qué unas gramíneas están verdes en enero y otras en agosto.
Metabolismo C3. Es el sistema ancestral. La enzima Rubisco captura el CO₂ directamente en las células del mesófilo y produce un compuesto de tres átomos de carbono. Su problema es que la Rubisco confunde el oxígeno con el dióxido de carbono, y esa confusión —la fotorrespiración— se dispara con el calor y cuando la planta cierra los estomas para no perder agua. Resultado: rendimiento óptimo entre 15 y 25 °C y caída pronunciada por encima de 30 °C. Son C3 el trigo, la cebada, el centeno, la avena, el arroz, y entre las forrajeras y céspedes la festuca, el raigrás, la poa y el dáctilo.
Metabolismo C4. Un sistema de concentración previa. El CO₂ es capturado en el mesófilo por otra enzima, la PEP carboxilasa, que no confunde el oxígeno y trabaja bien a concentraciones bajas; el carbono queda fijado en un ácido de cuatro carbonos que se transporta a unas células especializadas que rodean los haces conductores, la vaina del haz, de paredes gruesas y estancas. Allí se libera el CO₂ en concentración elevada alrededor de la Rubisco, que trabaja a pleno rendimiento sin fotorrespirar. Esta arquitectura, visible al microscopio como una doble corona de células alrededor de cada nervio, se conoce como anatomía de Kranz.
El sistema C4 cuesta energía, y por eso pierde frente al C3 por debajo de unos 20 °C y a la sombra. Pero por encima de esa temperatura gana en todo: fija más carbono, gasta aproximadamente la mitad de agua por gramo de materia seca producida y aprovecha mejor el nitrógeno. Son C4 el maíz, el sorgo, los mijos, la caña de azúcar, y entre las céspedes y ornamentales Cynodon, Zoysia, Paspalum, Pennisetum, Panicum y Miscanthus. Dentro de las Poaceae, la vía C4 ha aparecido de forma independiente más de veinte veces, lo que da idea de la presión selectiva del calor.
Traducido a España, esta bioquímica decide cosas muy concretas:
Los céspedes se dividen en dos mundos. Una mezcla de estación fría —festuca arundinácea, raigrás inglés, poa— se mantiene verde todo el invierno y sufre en julio y agosto, con un consumo de agua alto justo cuando menos hay. Una gramínea de estación cálida —bermuda, grama, Zoysia, Paspalum vaginatum— resiste el calor y el pisoteo con la mitad de riego, pero entra en latencia y se pone de color paja de noviembre a marzo. En Andalucía, Murcia y el litoral levantino la elección sensata es C4; en la cornisa cantábrica y en la meseta norte, C3. Discutir esto en términos de gusto por el color es perder el tiempo: es una cuestión de fisiología.
Y explica el calendario agrícola. Trigo y cebada se siembran en otoño y se recogen en junio, aprovechando el periodo fresco y húmedo; maíz y sorgo se siembran en primavera y ocupan el verano con riego. Dos cultivos en la misma parcela y en el mismo año, cada uno con el motor adecuado a su estación.
Las gramíneas ornamentales
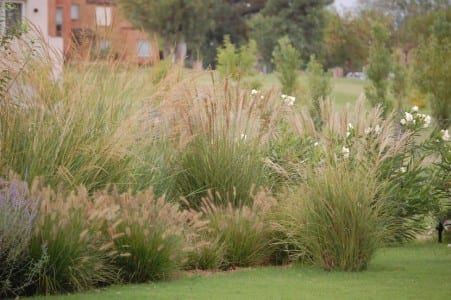
En jardinería, esta familia aporta lo que no aportan los arbustos: movimiento con el viento, transparencia a contraluz y estructura invernal. Una mata de Miscanthus o de Stipa iluminada por detrás a las siete de la tarde de octubre hace algo que ninguna flor consigue.
La división C3/C4 tiene aquí una aplicación directa que resuelve la duda más común, la de cuándo cortarlas:
Las de estación fría —Festuca glauca, Helictotrichon, Deschampsia cespitosa, Calamagrostis × acutiflora 'Karl Foerster', Stipa— arrancan a crecer en cuanto sube la temperatura a final de invierno, muchas son semiperennes y no admiten un rapado severo. Se limpian en febrero, peinando la mata para retirar la hoja muerta más que cortándola.
Las de estación cálida —Miscanthus, Panicum virgatum, Pennisetum, Muhlenbergia, Cortaderia— no mueven un dedo hasta mayo y son totalmente caducas. Se cortan a diez o quince centímetros del suelo entre marzo y abril, poco antes de que broten. Y por la misma razón no se plantan en otoño en zonas frías: sin capacidad de enraizar antes del invierno, la mata se pudre. Su época de plantación es la primavera avanzada.
La regla común es no cortar ninguna en otoño. El plumero seco es el interés de la planta durante cinco meses y el follaje muerto protege la corona del frío y del exceso de agua invernal.
Un aviso final sobre dos ornamentales muy vendidas en su día: Cortaderia selloana, el plumero de la pampa, y Pennisetum setaceum, el rabo de gato, figuran en el Catálogo Español de Especies Exóticas Invasoras. Su plantación, venta y transporte están prohibidos, y con motivo: una sola mata de plumero produce millones de semillas que el viento lleva a kilómetros y que colonizan taludes, ríos y solares en toda la cornisa cantábrica. Cuando se busque un plumero grande, hay alternativas no invasoras como Miscanthus sinensis, Muhlenbergia capillaris o el esparto autóctono (Macrochloa tenacissima).
En resumen
Las Poaceae sostienen la alimentación humana a través de los cereales y la ganadería a través de los pastos, y cubren entre el veinte y el cuarenta por ciento de la tierra emergida. Su anatomía es reconocible: caña hueca con nudos macizos, hoja partida en vaina y limbo con una lígula en la unión que sirve para identificarlas sin flor, y una corona a ras de suelo de la que salen los brotes. La clave de su éxito está en los meristemos intercalares, situados en la base de cada hoja y protegidos por las vainas: la hoja crece empujada desde abajo, de modo que arrancarle la punta no elimina tejido generador, y de ahí que se pueda pastar y segar indefinidamente mientras el punto de crecimiento siga a ras de suelo. Su unidad reproductiva es la espiguilla, con glumas, lema, pálea y una flor sin pétalos con estambres colgantes y estigmas plumosos, adaptada al viento; el fruto es una cariópside, un fruto entero y no una semilla. La polinización anemófila las convierte en la primera causa de alergia primaveral en España junto al olivo. Y la familia contiene los dos metabolismos fotosintéticos: las C3 rinden entre 15 y 25 °C y son las forrajeras y céspedes de invierno verde, mientras que las C4 concentran el CO₂ mediante la anatomía de Kranz, gastan la mitad de agua y dominan el verano, división que decide qué césped conviene en cada región de España y cuándo se cortan las gramíneas ornamentales: en febrero las frías, en marzo o abril las cálidas, y ninguna en otoño.

